Skip to content

+330535385257

{:gb}European Institute of Planted Forest – IEFC{:}{:fr}Institut Européen de la Forêt Cultivée – IEFC{:}{:es}Instituto Europeo Del Bosque Cultivado – IEFC{:}{:pt}Instituto Europeu De Floresta Plantada – IEFC{:}

{:gb}European Institute of Planted Forest – IEFC{:}{:fr}Institut Européen de la Forêt Cultivée – IEFC{:}{:es}Instituto Europeo Del Bosque Cultivado – IEFC{:}{:pt}Instituto Europeu De Floresta Plantada – IEFC{:}

{:gb}The multi-actor network for sustainable management and resilience of planted forests{:}{:fr}Le réseau multi-acteur pour la gestion durable et la résilience des forêts cultivées{:}{:es}La red para la gestión sostenible y la resiliencia de los bosques cultivados {:}{:pt}A rede IEFC para a gestão sustentável e resiliência das florestas cultivadas{:}

  • Homepage
  • Accueil
  • Página inicial
  • Página de inicio
  • About us
    • History
    • Histoire
    • História
    • Historia
    • Mission
    • Mission
    • Missão
    • Misión
    • Team
    • Équipe
    • Equipa
    • Equipo
    • Governance
      • Status and Governance
      • Statut et Gouvernance
      • Status e Governança
      • Estatus y gobernanza
      • General Meetings
      • Assemblées Générales
      • Assembleias Gerais
      • Asambleas Generales
    • Gouvernance
    • Governança
    • Gobernanza
    • Career Opportunities
    • Opportunités de carrière
    • Oportunidades de carreira
    • Oportunidades profesionales
    • Support IEFC – Make a donation
    • Soutenir l’IEFC
    • Apoie a IEFC
    • Apoye a IEFC
  • À Propos
  • Sobre nós
  • Quiénes somos
  • Our members
    • List of Members
    • Liste Des Membres
    • Lista de Membros
    • Lista de Miembros
    • Login IEFC Members
    • Connexion Membres IEFC
    • Faça login Membros da IEFC
    • Iniciar sesión Miembros de IEFC
    • Become a Member
    • Devenir membre
    • Torne-se Membro
    • Hazte Miembro
  • Nos Membres
  • Os Nossos Membros
  • Nuestros Miembros
  • Infrastructures
    • Network of Plots
    • Réseaux de Parcelles
    • Rede de Parcelas
    • Red de Parcelas
    • Digital Infrastructures
      • Silvalert
      • Formodels
      • Tree Data
    • Infrastructures Numériques
    • Infraestruturas Digitais
    • Infraestructuras Digitales
    • Living Labs
    • Laboratoires Vivants
    • Laboratórios Vivos
    • Laboratorios Vivientes
  • Infrastructures
  • Infraestruturas
  • Infraestructuras
  • Networking
    • Webinars
      • Webinars IEFC
        • AppPopuli+ and Silvalert
        • Maritime pine and Pine Wood Nematode
        • Douglas Fir health: insights from Europe
        • Webinars Replays – Let’s Talk About Planted Forests
      • Webinaires IEFC
      • Webinar on European Projects
        • FIRE-RES – Innovation Actions
      • Webinaire sur les Projets Européens
    • Webinaires
    • IEFC General Assembly – 2026
      • Registration
      • Tentative Agenda
      • Practical Information
    • Next Events
    • Évènements À Venir
    • Próximos Eventos
    • Próximos Eventos
    • IPC 27th Session
    • IEFC – Network Fund 2026
  • Réseautage
  • Rede de contactos
  • Redes
  • Projects
    • IEFC Projects
    • Projets IEFC
    • Projetos IEFC
    • Proyectos IEFC
    • Pasts Projects
      • DEFOR
      • DEFOR
      • DEFOR
      • DEFOR
      • FORSEE
      • FORSEE
      • FORSEE
      • FORSEE
      • IMACFORD
      • IMACFORD
      • IMACFORD
      • IMACFORD
      • EUROSILVASUR
      • EUROSILVASUR
      • EUROSILVASUR
      • EUROSILVASUR
      • FORRISK
      • FORRISK
      • FORRISK
      • FORRISK
      • PLURIFOR
      • PLURIFOR
      • PLURIFOR
      • PLURIFOR
      • Others
      • Autres
      • Outros
      • Otros
    • Projets Anciens
    • Projetos Anteriores
    • Proyectos Anteriores
  • Projets
  • Projetos
  • Proyectos
  • Media Library
    • Communication
      • Logo & Graphic Charter
      • Logo & Charte Graphique
      • Logótipo e Carta Gráfica
      • Logotipo y carta gráfica
      • IEFC Press
        • Press Kit
        • Dossier De Presse
        • Kit de Imprensa
        • Dossier de Prensa
        • Press Review about IEFC
        • La Presse Parle de l’IEFC
        • Revista de imprensa sobre a IEFC
        • Revista de prensa sobre IEFC
        • Press Releases
        • Communiqués de Presse
        • Comunicados de Imprensa
        • Comunicados de Prensa
        • Media Toolkits
        • Kit De Communication
        • Kits de ferramentas de Mídia
        • Kits Mediáticos
      • Presse IEFC
      • Imprensa da IEFC
      • Prensa IEFC
      • IEFC Newsletters
        • Subscribe To IEFC Newsletter
        • S’abonner À Notre Newsletter
        • Subscreva a Boletim do IEFC
        • Suscríbete al Boletín de IEFC
        • Our Latest Newsletters
        • Nos Dernières Newsletters
        • Nossas últimas Boletins
        • Nuestros últimos Boletines
      • Newsletters IEFC
      • Boletim do IEFC
      • Boletín del IEFC
    • Communication
    • Comunicação
    • Comunicación
    • IEFC Library
    • Bibliothèque IEFC
    • Biblioteca IEFC
    • Biblioteca IEFC
    • Resource Centre
    • Centre de Ressources
    • Centro de Recursos
    • Centro de Recursos
    • Educationnal Materials
    • Ressources Pédagogiques
    • Materiais Educativos
    • Materiales Educativos
    • IEFC Publications
    • Publications IEFC
    • Publicações do IEFC
    • Publicaciones del IEFC
    • Presentations And Papers
    • Présentations Et Articles
    • Apresentações e Artigos
    • Presentaciones y Artículos
  • Médiathèque
  • Biblioteca Multimédia
  • Biblioteca Multimedia
xClose Menu
Home/2023 January, Biotic, IEFC Newsletter, Risk management/Review of pinewood nematode research at the IUFRO Division 7 meeting in September 2022

Review of pinewood nematode research at the IUFRO Division 7 meeting in September 2022

4 January 2023 comm IEFC 0 Comments 0 tags
Home/2023 January, Biotic, IEFC Newsletter, Risk management/Bilan des recherches sur le nématode du pin lors de la réunion IUFRO division 7 de septembre 2022

Bilan des recherches sur le nématode du pin lors de la réunion IUFRO division 7 de septembre 2022

4 January 2023 comm IEFC 0 Comments 0 tags
Home/2023 January, Biotic, IEFC Newsletter, Risk management/Resumo da reunião da Divisão 7 da IUFRO, de Setembro de 2022, relativa á investigação sobre o nemátodo do pinheiro

Resumo da reunião da Divisão 7 da IUFRO, de Setembro de 2022, relativa á investigação sobre o nemátodo do pinheiro

4 January 2023 comm IEFC 0 Comments 0 tags
Home/2023 January, Biotic, IEFC Newsletter, Risk management/Conferencia IUFRO División 7

Conferencia IUFRO División 7

4 January 2023 comm IEFC 0 Comments 0 tags
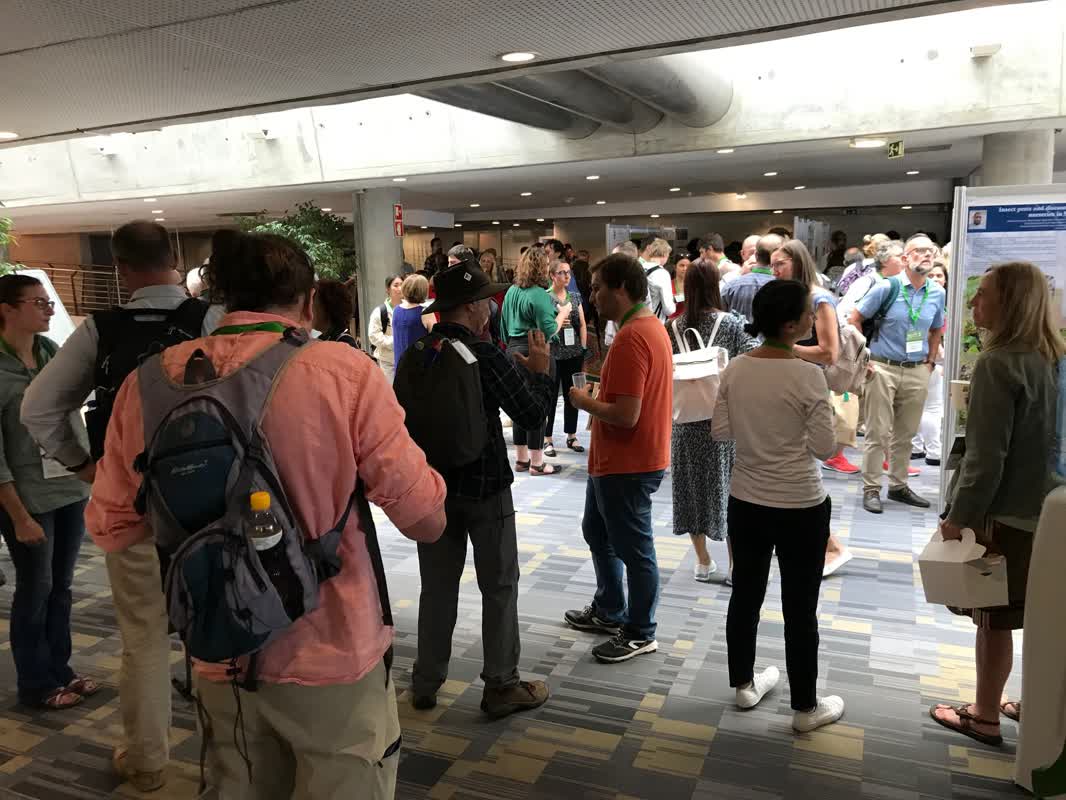
Photo credits: K. Nakamura-Matori

The IUFRO Division 7 (Forest Health. Pathology and Entomology) Conference took place in Lisbon from the 6th to 9th September 2022, with 350 participants present (and 60 remote participants) from 41 countries.

The session on Pine Wilt Disease (PWD,) organized within this meeting, had a massive participation in 3 sub-sessions involving 14 oral presentations and 15 posters.

Four major themes were addressed:

1. PWD history and survey

More than 100 years have passed since Pine Wilt Disease (PWD), caused by the Pinewood nematode (PWN – Bursaphelenchus xylophilus) invaded Japan, first occurring in the south-western region, and later spread throughout the country reaching the cooler climate high-latitude and high-elevation regions. Native pine trees (Pinus thunbergii and P. densiflora) are nearly exterminated in some of the old-damaged areas. In some locations, where pine forest is economically important for the timber industry or mushroom production, regeneration is difficult. Moreover, pine trees are an essential component in wind and sand-break forests in the coastal area, as well as to the traditional scenery of Japan.

In Korea, more than thirty years have passed since PWD was first detected in a small number of infected pine trees, in a small mountain in Busan, in 1988., in 2022, the PWD was reported from 135 districts, counties and cities. The number of infected pine trees (mainly P. thunbergii and P. densiflora) has fluctuated during 30 years, surpassing 2 million trees in 2014. Recently, it had decreased to 390,000 in 2021, but in the last control season , the number of infected pine trees increased again, by 22.6% compared to previous year. the years, PWD research and survey techniques have developed considerably over the years. NFC electronic tags are used for  monitoring blind spots, and a QR code system was implemented to record the presence of the nematode in  dead pine trees , allowing to check in real time the information inputted, and record the management process. The  genome sequencing of the population of Korean pinewood nematodes showed an extremely stratified population structure, mainly composed of two major lineages within which the genetic diversity is extremely limited that seem to indicate independent introductions.

In 1999 the PWN was detected in Portugal on maritime pine (Pinus pinaster) and on the following 20 years, thousands of maritime pine trees were annually cut, in spite of the efforts implemented by the Portuguese Forest Authority (ICNF), following the guidelines of the European Commission Implementing Decision 2012/535/EU, in order to contain its spread. Over the last 11 years more than 83,500 wood composite samples were analyzed from symptomatic trees, with an average of 8% PWN positive results, none originating from the Buffer Zone (20 km along the Spanish border). As a consequence of the containment actions, close to 18 million declining trees were felled in the mainland territory, especially in the Buffer Zone (2.9 million), and around 43 million insect-vectors were caught in the traps. A new focus was detected in Madeira Island in 2009 and, in Spain, the PWD was first detected in October 2008 and declared eradicated in 2013, although subsequently, five other outbreaks were reported in Caceres, As Neves, Valverde del Fresno, Sancti-Spiritus and Lagunilla (at about 70 km, the furthest from the Portuguese border).

In North America, where the PWN is native causing minor damage to native conifers, it was detected initially in longleaf pine (Pinus palustris) timber, in Louisiana,. Over the past ten years, due to stricter regulations on PWN, a large number of pine wood samples have been analyzed  at the Agronomic Division of the North Carolina Department of Agriculture & Consumer Services. Between 2012 and 2022, 67,135 pine wood samples were analyzed, and 7,462 reports were generated in connection with the issuance of phytosanitary certificates by USDA/APHIS/PPQ for export of pine wood logs. Small amounts of the PWD were detected in 2,15% of the samples.

The detection of the PWN  in wood samples is made using, the Baermann method (funnel or modified) for recommended periods of 24 or 48 hours (Schroder et al., 2009; ISPM 27, 2016). In one of the studies presented, the 24h exposure to temperatures of 25ºC allowed to extract  80% of the nematodes in sample.

2. PWD dynamics and spread

Recently, the tree mortality of USA native pine t((P. ponderosa) in Colorado was associated with PWN reported from the Front Range of. Over the past years,  sampling to survey for the PWN in native pine (Pinus ponderosa) and the collection of trapped longhorn beetles (Monochamus clamator and M. scutellatus) across natural and urban forest landscapes alloed determining the insect flight period and the  PWN was found in 3.6% and 4.2% of sampled pines and beetles, respectively. This was the first report of M. clamator–PWN association in the United States.

Until very recently, it was assumed that, under Portuguese climatic conditions, trees would show symptoms in the same year of the nematodes’ inoculation by the vector. However, some uncertainty remained related to the likelihood of latency of the pine wilt. To assess the the latency occurrence a mathematical model (ETpN) was developed allowing the identification of 3 sub-regions in Portugal: “No wilt expected”, “Latency (wilt expected in the year following the infestation)” or “Wilt expression in the year of inoculation”.

A field trial was established with plots located in pine stands form the 3 different sub-regions. Each month, from June until November, 5 healthy trees were inoculated at each selected location, with 10.000 Bx, using Arbojet Quick-Jet kit, in the lower part of the canopy. Two weeks after the first visual wilting symptoms, the trees were felled and sampled for the presence of the PWN. At the end of the experimental period, all the remaining trees were also felled and sampled for the PWN. Latency was in fact observed in the sub-region where it was expected but also in the “No wilt expected” sub-region where the  wilt occurred in the year of infestation.

Since the disease dispersal depends on the flight range of the vector insects it is important to study the flight distance, period, and velocity in order to define protective measures. Thus, two vector species in Korea, M. saltuarius and M. alternatus adults, were studied using flight mills. In M. saltuarius, the average flight distance of females in a single flight session was 0.43 km, while males flew about 0.50 km. The average cumulated flight distances for entire life span in females and males were 1.93 km (maximum flight distance: 5.21 km) and 2.71 km (maximum flight distance: 5.73 km), respectively. In M. alternatus, the average flight distance of females in a single flight session was 1.53 km, while males flew about 2.05 km. The average cumulated flight distances for entire life span in females and males were 6.64 km (maximum flight distance: 15.35 km) and 9.89 km (maximum flight distance: 29.01 km), respectively.

Considering the vectorinsect-high flying ability, the PWD spread in natural conditions was assessed in Portugal along a 6 km long, and 100 m wide transect in a continuous P. pinaster stand, starting at the location of one PWN infected tree detected in 2018, in a previously non-affected parish. In 2019 and 2020, from May until  October, 30 multi-funnel traps with Galloprotect 2D-plus lures were placed in-paired, along the transect every  50 m. All vector-insect (M. galloprovincialis) caught were quantified and assessed for the PWN presence. In winter of 2020 and 2021, the transect was intensively surveyed and all symptomatic trees were felled and sampled. In the 2020 survey, out of the 65 trees sampled only two, located in the surroundings of the initial infection spot (less than 100 m) were infected with the PWN. However, in the 2021 survey, the number of dead or symptomatic pine trees increased to 104 with ten infected with the PWN and found near the end of the transect. Moreover, the PWN was found in 35 of the 510 vector-insects- caught in the traps during summer 2020, with four infected beetles on the traps further away from the initial infection spot. Within one year, the vector-insects rapidly spread along the 6 kms’ transect, some of them carrying PWN (6.4%) and consequently spreading the disease throughout the whole area.

Another study related to the dispersal of the vector-insect M. galloprovincialis was carried out in France analyzing population genetic connectivity to quantify contemporary dispersal in parentage using beetles collected in baited traps, in a maritime pine homogeneous landscape of and in a heterogeneous landscape of mixed broadleaved and pine stands,. Almost all of the displacement occurred between geographical sectors, suggesting long distance dispersal.

3. Interactions between Host-PWN-Other micro-organisms

The PWN uses its stylet to perforate cell walls and to release hydrolytic enzymes against cell wall glycans. More susceptible (P. pinaster) and less susceptible (P. pinea) species were inoculated with the PWN and the disease progression was monitored under controlled temperatures and soil water contents. At the end of the assays, differences in the nematode reproduction were found on both species. High-throughput vibrational spectroscopy techniques were applied for a global cell-walls’ characterization. Preliminary data revealed that there are significantly different cell-walls compositional properties between PWN-inoculated and control P. pinaster samples, where phenolic compounds are upregulated in PWN-inoculated plants, presumably as a defense response mechanisms against inoculation.

The interspecific interaction between the nematode and its symbiotic partners seems to play a  role in promoting pathogenicity and invasiveness of the PWN. Chemical and molecular signals positively influence survival, reproduction and spread of the PWN. On the other hand, the characterization of the structure and dynamics of the nematode-fungi interactions (using culturable and non-culturable approaches with special emphasis in metagenomics analyses) may allow to understanding if PWN-associated mycobiota plays a key-role in the development of PWD, and to which extend can it be used to disrupt the disease cycle. The diversity and structure of the fungal communities in P. pinaster varied as the disease progresses s suggesting that the PWN presence affects the endophytic fungal communities. For both P. pinaster and PWN fungal communities, differences were also found with the Ophiostomatales being detected only in PWN-infected P. pinaster trees, corroborating our culturomics results previously obtained.

4. Control methods and management strategies

The clear-cut strategy usually implemented after first detection in PWN-free areas was compared with an alternative tree-by-tree selective cutting combined with increased surveillance, and the last revealed to be a better choice to control PWN in terms of cost-effectiveness.

In Japan, the PWD control mainly consists of the destruction of infected trees combined with the  preventive spraying with insecticide and trunk injection of nematicide on healthy trees with enormous costs and constrains to pesticide use.  Thus, seedlings of resistant clones are commonly being used in new pine plantations.

The susceptibility of different P. pinaster provenances (Spanish, Portuguese, French and Marocco) were tested for B. xylophilus susceptibility in two seed orchards, one belonging to the Galician P. pinaster breeding program in Spain and the other to the Landes, in France. Significant differences in survival, wilting symptoms, morphological traits and density of nematode populations were found among provenances and seed orchards. A geographic pattern was found with the provenances from the south-east of the Iberian Peninsula showing the highest resistance to PWD.

The efficacy of sixteen locally produced formulations of emamectin benzoate (EB) against the PWN were compared in Korea. At high concentrations of 0.258 μg/ml, nematode reproduction was highly suppressed, although substantial variations in sublethal toxicities, which can be related to the inert ingredients used by the producers, were found.

Although highly effective, chemical control commonly resorts to the use of highly damaging synthetic chemicals with adverse effects on forest ecosystems and human health. a significant effort has been made to develop a more sustainable chemical management of the PWN based on the volatiles and volatile extracts from natural sources, mainly plants and fungi.. Essential oils are complex mixtures of plant volatiles, mainly extracted through hydro distillation from medicinal and aromatic plant species, and may prove to be toxic to the PWN and safe to the pine host with low environmental impact. Undecanoic acid showed a stronger activity reaching a half maximal effective concentration (EC50) of 0.06 μg/mL, while decanoic acid showed a higher EC50, namely 0.13 μg/mL Future research will determine the activity of other medium chain fatty acids as potential biopesticidal molecules to be used in sustainable pest management strategies.

The search for antagonists is also increasing, and in laboratory assays carried out in Portugal, the nematophagous fungi Esteya vermicola and E. floridanum revealed to be a promising biocontrol agent against the PWN. In fact, the protective effects of E. vermicola coreana (G810) inoculations on the large pine trees of Mt. Wora, South Korea,  , and in Kwangdong province in China, were evaluated revealing survival rates of 50% and 60%, respectively.

In Spain, eight fungal species with nematophagous potential were tested in vitro, where the Beauveria species (B. bassiana and B. pseudobassiana) and Trichoderma citrinoviridae not only prevented PWN reproduction but also showed nematicidal effect.

Luís Bonifácio & Edmundo Sousa

Instituto Nacional de Investigação Agrária e Veterinária, I.P. (INIAV), Av. da República, Quinta do Marquês, 2780-157 Oeiras, Portugal. Luis.bonifacio@iniav.pt; GREEN-IT Bioresources for Sustainability, ITQB NOVA, Av. da República, 2780-157 Oeiras, Portugal

Luís Bonifácio is the coordinator of IUFRO (international Union of Forest Research Organizations) working party on the Pine Wilt Disease (7.02.10).

https://www.iufro.org/science/divisions/division-7/70000/70200/70210/

Post navigation

Previous PostPrevious
Next PostNext
Crédits photos : K. Nakamura-Matori

La Conférence IUFRO Division 7 (Forest Health. Pathology and Entomology) a eu lieu à Lisbonne du 6 au 9 septembre 2022, avec 350 participants en presentiel et 60 à distanciel venant de 41 pays.

La session sur la maladie du dépérissement du pin (PWD) organisée dans le cadre de cette réunion a connu une participation massive pour 3 séances impliquant 14 présentations orales et 15 intervenants.

Quatre thèmes majeurs ont été abordés :

1. Historique et enquête sur les dégats induits par le nématode du Pin

Plus de 100 ans se sont écoulés depuis que la maladie du flétrissement du pin (PWD), causée par le nématode du pin (PWN – Bursaphelenchus xylophilus) a envahi le Japon, d’abord dans la région du sud-ouest, puis dans tout le pays, atteignant les régions de haute latitude et de haute altitude au climat plus frais. Les pins indigènes (Pinus thunbergii et P. densiflora) sont presque exterminés dans certaines des anciennes zones endommagées. Dans certains endroits où les forêts de pins sont économiquement importantes pour l’industrie du bois ou la production de champignons, la régénération est difficile. En outre, les pins sont un élément essentiel des forêts comme brise vent pou pour éviter la mobilité des dunes dans la zone côtière ou dans les paysages traditionnels du Japon.

En Corée, plus de trente ans se sont écoulés depuis que le PWD a été trouvé pour la première fois, en 1988, dans une petite montagne de Busan, où l’on ne trouvait que quelques pins infectés. Aujourd’hui, en 2022, le PWD a été signalé dans 135 districts, comtés et villes. Le nombre de pins infectés (principalement P. thunbergii et P. densiflora) a fluctué pendant 30 ans, dépassant les 2 millions d’arbres en 2014. Récemment, il a diminué à 390 000 en 2021, mais au cours de la dernière saison de lutte, le nombre de pins infectés a de nouveau augmenté, de 22,6 % par rapport à l’année précédente. Au fil des années, les techniques de recherche et d’enquête sur les DDP se sont considérablement développées. Des étiquettes électroniques NFC sont utilisées pour éviter les angles morts de la surveillance, et un système de gestion des enregistrements utilisant des QR codes depuis la surveillance et le diagnostic des pins morts jusqu’au contrôle a été établi, permettant de vérifier en temps réel les informations saisies et d’enregistrer le processus de gestion. Le séquençage du génome entier des nématodes du pin coréen à l’échelle de la population a montré une structure de population extrêmement stratifiée, principalement composée de deux lignées majeures au sein desquelles la diversité génétique est extrêmement limitée. Ces deux lignées sont différentiellement liées à des souches extérieures à la Corée, ce qui suggère plusieurs introductions indépendantes.

En 1999, le nématode du pin a été détecté au Portugal sur des pins maritimes (Pinus pinaster) et au cours des 20 années suivantes, des milliers de pins maritimes ont été tués chaque année, malgré les efforts déployés par l’autorité forestière portugaise (ICNF) pour contenir sa propagation, conformément aux lignes directrices de la décision d’exécution 2012/535/UE de la Commission. Au cours des 11 dernières années, plus de 83 500 échantillons de bois composite provenant d’arbres symptomatiques ont été analysés, avec une moyenne de 8 % de résultats positifs au nématode du pin, dont aucun dans la zone tampon (20 km le long de la frontière espagnole). Suite aux actions de confinement, près de 18 millions d’arbres dépérissant ont été abattus sur le territoire continental, en particulier dans la zone tampon (2,9 millions), et environ 43 000 insectes vecteurs ont été capturés dans les pièges. Un nouveau foyer a été détecté sur l’île de Madère en 2009 et en Espagne, le PWD a été détecté pour la première fois en octobre 2008 et déclaré éradiqué en 2013, bien que par la suite, cinq autres foyers aient été signalés à Caceres, As Neves, Valverde del Fresno, Sancti-Spiritus et Lagunilla (le plus éloigné de la frontière portugaise à environ 70 km).

En Amérique du Nord, où le nématode du pin est indigène, il a été découvert pour la première fois dans du bois de pin à feuilles longues (Pinus palustris), en Louisiane, causant des dommages mineurs aux conifères indigènes. Au cours des dix dernières années, en raison d’une réglementation plus stricte sur le nématode du pin, un grand nombre d’échantillons de bois de pin ont été soumis à la division agronomique du département de l’agriculture et des services aux consommateurs de Caroline du Nord. Au cours des exercices 2012 à 2022, 67 135 échantillons de bois de pin ont été analysés et 7 462 rapports ont été générés dans le cadre de la délivrance de certificats phytosanitaires par l’USDA/APHIS/PPQ pour l’exportation de grumes de bois de pin. Dans l’ensemble, la prévalence du nématode du pin dans les échantillons soumis était de 2,15 %, ce qui révèle une faible présence du nématode du pin dans les grumes de bois de pin exportées, mais aussi l’importance des mesures réglementaires et des tests de laboratoire.

Une étude a été présentée pour améliorer l’extraction du nématode du pin des échantillons de bois, la méthode de Baermann (entonnoir ou modifiée) 24°С ou 48°С heures est généralement recommandée (Schroder et al., 2009 ; ISPM 27, 2016). L’objectif de notre recherche était de déterminer le temps et la température d’exposition optimale pour l’extraction de B. xylophilus la méthode de l’entonnoir de Bаermann. Toutes les différences entre les régimes de température (18ºC et 25ºC) étaient significatives, avec de meilleurs résultats avec la température la plus élevée et la majorité des nématodes, environ 80%, ont été extraits pendant le premier jour, ce qui était significativement plus élevé que pendant le deuxième jour.

2. Dynamique et propagation de la maladie du dépérissement du pin

La mortalité des arbres de la forêt indigène des États-Unis associée au nématode du pin est nouvellement signalée dans la Front Range du Colorado. Un réseau d’échantillonnage a été établi pour étudier le nématode du pin dans les pins indigènes (Pinus ponderosa) et les longicornes (Monochamus clamator et M. scutellatus) sur plusieurs années et dans des paysages forestiers naturels et urbains. La phénologie du vol était similaire pour les vecteurs. Le nématode du pin a été trouvé chez 3,6 des pins  et 4,2 % des coléoptères échantillonnés, selon le premier rapport de l’association M. clamator-PWN aux États-Unis.

Jusqu’à très récemment, on supposait que dans les conditions climatiques portugaises, les arbres présenteraient des symptômes l’année même de l’inoculation des nématodes par le vecteur. Cependant, une certaine incertitude demeure quant à la probabilité de latence de l’expression du flétrissement du pin. Pour évaluer l’expression retardée du flétrissement du pin (latence), une base de données climatiques détaillée a été créée et le modèle ETpN a déterminé 3 sous-régions au Portugal : “Pas de flétrissement attendu”, “Latence (flétrissement attendu dans l’année suivant l’infestation)” ou “Expression du flétrissement dans l’année d’inoculation”. Chaque mois, de juin à novembre, 5 arbres sains ont été inoculés à chaque endroit sélectionné, avec 10.000 Bx, en utilisant le kit Arbojet Quick-Jet, dans la partie inférieure de la canopée. Deux semaines après les premiers symptômes visuels de flétrissement, les arbres ont été abattus et échantillonnés pour détecter la présence du nématode du pin. À la fin de la période expérimentale, tous les arbres restants ont également été abattus et échantillonnés pour le nématode du pin. La latence a en fait été observée dans la région prévue. Dans la région “Pas de flétrissement attendu”, les conditions climatiques n’étaient pas compatibles et le flétrissement s’est produit l’année de l’infestation.

La capacité de vol des insectes vecteurs étant importante pour la protection des forêts de pins, nous avons testé la distance, le temps et la vitesse de vol des adultes de M. saltuarius et M. alternatus, deux espèces vectrices en Corée, en utilisant des moulins de vol. Chez M. saltuarius, la distance moyenne de vol des femelles en une seule session de vol était de 0,43 km, tandis que les mâles volaient environ 0,50 km. Les distances moyennes de vol cumulées pendant toute la durée de vie des femelles et des mâles étaient respectivement de 1,93 km (distance maximale de vol : 5,21 km) et de 2,71 km (distance maximale de vol : 5,73 km). Chez M. alternatus, la distance moyenne de vol des femelles en une seule session de vol était de 1,53 km, tandis que les mâles volaient environ 2,05 km. Les distances de vol moyennes cumulées pendant toute la durée de vie des femelles et des mâles étaient respectivement de 6,64 km (distance de vol maximale : 15,35 km) et de 9,89 km (distance de vol maximale : 29,01 km).

Compte tenu de la forte capacité de vol de l’insecte vecteur, la propagation du nématode du pin dans des conditions naturelles a été évaluée au Portugal le long d’un transect de 6 km de long et 100 m de large a été établi sur un peuplement continu de P. pinaster, en commençant à l’emplacement d’un arbre infecté par le nématode du pin détecté en 2018, dans une paroisse précédemment non affectée. En 2019 et 2020, de mai à octobre, 30 pièges multi-entonnoirs avec des leurres Galloprotect 2D-plus ont été placés par paires à 50 m de distance, le long du transect. Tous les insectes-vecteurs (M. galloprovincialis) capturés ont été quantifiés et évalués pour la présence du nématode du pin. Durant les hivers 2020 et 2021, le transect a fait l’objet d’une enquête intensive et tous les arbres symptomatiques ont été abattus et échantillonnés. Lors de l’enquête de 2020, 65 arbres ont été échantillonnés et seuls deux étaient infectés par le nématode du pin, situés dans les environs du point d’infection initial (moins de 100 m). Cependant, lors de l’enquête de 2021, le nombre de pins morts ou symptomatiques est passé à 104, dont dix étaient infectés par le nématode du pin et se trouvaient près de la fin du transect. En outre, le nématode du pin a été trouvé chez 35 des 510 insectes-vecteurs capturés dans les pièges au cours de l’été 2020, avec quatre coléoptères infectés sur les pièges plus éloignés de l’infection initiale. En un an, les insectes-vecteurs se sont rapidement dispersés le long des 6 km du transect, certains d’entre eux étant porteurs du nématode du pin (6,4 %) et dispersant ainsi la maladie dans toute la zone.

Une autre étude liée à la dispersion de l’insecte vecteur M. galloprovincialis a été réalisée en France ; elle analyse la connectivité génétique des populations pour quantifier la dispersion contemporaine dans la parentèle, à travers un paysage homogène de pins maritimes et un paysage hétérogène de peuplements (mixtes) de feuillus et de pins, en utilisant des coléoptères collectés dans des pièges appâtés. Presque tous les déplacements ont eu lieu entre secteurs géographiques, ce qui suggère une dispersion à longue distance.

3. Interactions entre l’hôte, le nématode et les autres micro-organismes

Le nématode utilise son stylet pour perforer les parois cellulaires et libérer des enzymes hydrolytiques contre les glycans des parois cellulaires. Des espèces très sensibles (P. pinaster) et des plantes moins sensibles (P. pinea) ont été inoculées avec le nématode du pin et la progression de la maladie a été suivie sous contrôle des températures et des teneurs en eau du sol. À la fin des essais, des différences dans le facteur de reproduction du nématode sur les deux espèces ont été trouvées. Des techniques de spectroscopie vibrationnelle à haut débit ont été appliquées pour une caractérisation globale des parois cellulaires. Les données préliminaires ont révélé que les propriétés de la composition des parois cellulaires sont significativement différentes entre les échantillons de P. pinaster inoculés par le nématode et les échantillons témoins, les composés phénoliques étant régulés à la hausse dans les plantes inoculées par le nématode, probablement en réponse aux mécanismes de défense des plantes.

La communication interspécifique entre le nématode et ses partenaires symbiotiques joue un rôle potentiel dans la promotion de la pathogénicité et du caractère invasif du nématode du pin. Les signaux chimiques et moléculaires influencent positivement la survie, la reproduction et la propagation du nématode. D’autre part, la caractérisation de la structure et de la dynamique des interactions nématodes-champignons à l’aide d’approches culturales et non culturales, avec un accent particulier sur les analyses métagénomiques, visant à comprendre si le mycobiote associé au nématode joue un rôle clé dans le développement de la maladie, et dans quelle mesure il peut être ciblé pour perturber le cycle de la maladie. La diversité et la structure des communautés fongiques de P. pinaster varient en fonction de l’état de la maladie, ce qui suggère que la présence du nématode du pin affecte les communautés fongiques endophytes. Pour les communautés fongiques de P. pinaster et de PWN, des différences ont également été observées entre les sites et les Ophiostomatales n’ont été détectées que dans les P. pinaster infectés par le PWN, ce qui corrobore nos résultats de cultures obtenus précédemment.

4. Méthodes de contrôle et stratégies de gestion

La stratégie de coupe à blanc habituellement mise en œuvre après la première détection dans les zones exemptes de nématodes du pin a été comparée à une autre stratégie de coupe sélective arbre par arbre associée à une surveillance accrue, et cette dernière s’est révélée être un meilleur choix pour lutter contre le nématode du pin en termes de rentabilité.

Au Japon, la lutte contre le nématode du pin consiste principalement à éliminer les arbres endommagés, à pulvériser préventivement un insecticide sur les arbres vivants et à injecter un nématicide dans le tronc, ce qui entraîne des coûts et des contraintes énormes pour l’utilisation des pesticides. Les semis de clones résistants sont couramment utilisés dans les nouvelles plantations de pins.

La sensibilité des provenances de P. pinaster (espagnoles, portugaises, françaises et marocaines) à B. xylophilus a été testée et leur comportement a été comparé à celui de deux vergers à graines, l’un appartenant au programme de sélection de P. pinaster Galicien en Espagne et l’autre dans les Landes, en France. Des différences significatives dans la survie, les symptômes de flétrissement, les traits morphologiques et la densité des populations de nématodes ont été trouvées entre les différentes provenances et les vergers à graines. Un modèle de sensibilité en fonction de la géographie a été validé démontrant que les provenances du sud-est de la péninsule ibérique ont une plus grande résistance au PWD.

L’efficacité de seize formulations d’emamectine benzoate (EB) produites localement contre le nématode du pin est comparée en Corée. À des concentrations élevées de 0,258 μg/ml, la reproduction des nématodes a été fortement supprimée dans toutes les formulations sauf trois. La reproduction des populations exposées aux formulations des deux groupes a varié de manière significative, indépendamment des toxicités sublétales. Ces variations peuvent être attribuées à des différences dans les ingrédients inertes utilisés par les producteurs.

Bien que très efficace, la lutte chimique recourt généralement à l’utilisation de produits chimiques de synthèse très nocifs, qui ont des effets néfastes sur les biosystèmes forestiers et la santé humaine. Dans le but de développer une gestion chimique plus durable du nématode du pin, des recherches actives ont été menées sur les substances volatiles et les extraits volatils provenant de sources naturelles, principalement des plantes et des champignons. Les huiles essentielles sont des mélanges complexes de substances volatiles végétales, principalement extraites par hydrodistillation d’espèces végétales médicinales et aromatiques, et peuvent s’avérer toxiques pour le nématode du pin et sans danger pour le pin hôte, tout en ayant un faible impact sur l’environnement. L’acide undécanoïque a montré une activité plus forte atteignant une concentration efficace demi-maximale (EC50) de 0,06 μg/mL, tandis que l’acide décanoïque a montré une EC50 plus élevée, à savoir 0,13 μg/mL Les recherches futures détermineront l’activité d’autres acides gras à chaîne moyenne comme molécules biopesticides potentielles à utiliser dans des stratégies de gestion durable des ravageurs.

La recherche d’antagonistes s’intensifie également, et lors d’essais en laboratoire réalisés au Portugal, les champignons nématophages Esteya vermicola et E. floridanum se sont révélés être un agent de biocontrôle prometteur contre le nématode du pin. En fait, les effets protecteurs des inoculations d’E. vermicola coreana (G810) sur les grands pins ont été évalués au Mont Wora, en Corée du Sud et dans la province de Kwangdong en Chine, révélant des taux de survie de 50% et 60% respectivement.

En Espagne, huit autres espèces fongiques à potentiel nématophage ont été testées in vitro, où les espèces Beauveria (B. bassiana and B. pseudobassiana) et Trichoderma citrinoviridae ont non seulement empêché la reproduction du nématode du pin mais ont également montré un effet nématicide.

Luís Bonifácio & Edmundo Sousa

Instituto Nacional de Investigação Agrária e Veterinária, I.P. (INIAV), Av. da República, Quinta do Marquês, 2780-157 Oeiras, Portugal. Luis.bonifacio@iniav.pt; GREEN-IT Bioresources for Sustainability, ITQB NOVA, Av. da República, 2780-157 Oeiras, Portugal

Luís Bonifácio est le coordinateur du groupe de travail de l’IUFRO (Union Internationale des Instituts de Recherches Forestières) sur la maladie du flétrissement du pin (7.02.10).

https://www.iufro.org/science/divisions/division-7/70000/70200/70210/

Post navigation

Previous PostPrevious
Next PostNext
Figura: K. Nakamura-Matori

O congresso IUFRO que juntou toda a Divisão 7 (Sanidade Florestal. Patologia e Entomologia) teve lugar em Lisboa entre os dias 6 e 9 de Setembro de 2022 e contou com 350 participantes (mais 60 em remoto) provenientes de 41 países.

A sessão dedicada à Doença da Murchidão dos Pinheiros (Pine Wilt Disease – PWD) causada pelo Nemátode da Madeira do Pinheiro (NMP – Bursaphelenchus xylophilus) teve uma participação muito significativa com 14 apresentações orais divididas em 3 subsessões e 15 pósteres.

Foram abordados quatro temas gerais:

1. Dispersão e prospeção do NMP

Decorreram mais de 100 anos desde que a Doença da Murchidão dos Pinheiros (DMP – PWD), causada pelo NMP chegou ao Japão, primeira ocorrência na região sudoeste, tendo-se posteriormente dispersado pelo país até atingir os climas mais frios e zonas de maior altitude. Nas zonas onde a doença já se encontra há mais tempo, os pinheiros nativos (Pinus thunbergii e P. densiflora) foram quase totalmente exterminados, com fortes consequências económicas na indústria de madeira e outras atividades, tais como a produção de cogumelos. A morte dos pinheiros teve ainda impacto na proteção contra o vento, preservação dos solos e na paisagem tradicional japonesa.

A deteção do NMP na República da Coreia do Sul ocorreu há mais de 30 anos, quando, em 1988, foram encontrados pouco exemplares num pequeno número de pinheiros, nas montanhas perto de Busan. Agora, em 2022, a DMP já foi reportada em 135 distritos, concelhos ou cidades. O número de pinheiros infestados (principalmente P. thunbergii e P. densiflora) oscilou ao longo do tempo tendo ultrapassado os 2 milhões em 2014. Em 2021 as novas infestações decresceram para 390,000, mas na última época de prospeção, voltaram a aumentar em cerca de 22.6%.

Durante estes 30 anos a investigação e a prospeção evoluíram consideravelmente. A metodologia “NFC electronic tags” é utilizada para regiões onde a prospeção no terreno não é efetuada, tendo sido implementado o sistema de registo com códigos QR para a monitorização e diagnóstico da presença do NMP nos pinheiros mortos, permitindo a verificação da informação em “tempo-real” e a sua utilização nas medidas de gestão da floresta.

A sequenciação do genoma das populações de NMP da Coreia revelou uma estrutura extremamente estratificada, composta por duas linhagens principais que apresentam uma diversidade genética muito limitada, parecendo estar relacionadas com introduções independentes.

Em 1999, o NMP foi detetado em Portugal em pinheiro-bravo (Pinus pinaster) e nos 20 anos subsequentes milhares de pinheiros foram mortos anualmente, apesar dos esforços da Autoridade Florestal Nacional (agora ICNF), que seguiram as diretrizes da Comissão Europeia (Commission Implementing Decision 2012/535/EU). Durante os últimos 11 anos mais de 83,500 amostras compostas de madeira provenientes de pinheiros com sintomas de declínio foram analisadas, tendo-se registado uma taxa de 8% de resultados positivos quanto à presença do NMP, sendo que nenhuma das deteções positivas se encontravam na Zona Tampão de 20 km definida ao longo da fronteira com Espanha. As ações para a contenção da doença já levaram ao abate de 18 milhões de pinheiros no território continental de Portugal (2.9 milhões na Zona Tampão) e à captura de cerca de 43,000 insetos-vetores (Monochamus galloprovincialis) nas armadilhas multifunil instaladas com atrativo. Um novo foco da doença foi detetado em 2009 na ilha da Madeira e em outubro de 2008 ocorreu a primeira deteção em território espanhol. Este foco foi declarado erradicado em 2013 mas posteriormente novos focos foram encontrados em Cáceres, As Neves, Valverde del Fresno, Sancti-Spiritus e Lagunilla (sendo este último o mais afastado da fronteira com Portugal, cerca de 70 km).

Na América do Norte, onde o NMP é nativo causando danos muito limitados nos pinheiros autóctones, foi detetado pela primeira vez em madeira de Pinus palustris, no estado do Louisiana. Nos últimos 10 anos, a aplicação de regulamentação mais rigorosa sobre o NMP levou à análise de grande número de amostras de madeira na Divisão Agronómica do Departamento de Agricultura da Carolina do Norte (Agronomic Division of the North Carolina Department of Agriculture & Consumer Services). Entre 2012 e 2022, foram analisadas 67,135 amostras de madeira de pinheiro e emitidos 7,462 certificados fitossanitários (USDA/APHIS/PPQ), para exportação de madeira. Apenas em 2.15% das amostras foram detetadas pequenas quantidades de NMP.

A deteção de NMP em amostras de madeira é realizada pelo método de extração pelo funil de Baermann ou outra modificação (como o método do tabuleiro) sendo recomendadas 24 ou 48 horas. Um estudo apresentado determinou que a exposição de 24h à temperatura de 25ºC permitiu a obtenção de cerca de 80% dos nemátodes presentes na madeira.

2. Dinâmica e dispersão da Doença da Murchidão dos Pinheiros

Recentemente foi registada a mortalidade de pinheiros nativos dos Estados Unidos da América (P. ponderosa) associada à infeção pelo NMP, no estado do Colorado. A prospeção efetuada nos últimos anos de pinheiros com sintomas e de insetos cerambicídeos (Monochamus clamator e M. scutellatus) capturados em armadilhas, na floresta e em ambiente urbano, permitiu a determinação do período de voo dos insetos e das taxas de infestação pelo NMP de 3.6% das amostras de madeira e 4.2% dos insetos. Foi pela primeira vez registada a associação do NMP com M. clamator nos EUA.

Até recentemente foi assumido que nas condições climáticas de Portugal, os pinheiros infestados naturalmente pelo NMP desenvolveriam sintomas visuais (amarelecimento da copa) ainda no mesmo ano. Todavia, permanecia alguma incerteza quanto à possibilidade de ocorrer latência (pinheiros infestados sem desenvolverem sintomas). Para avaliar a probabilidade de ocorrência de latência nos sintomas da infestação por NMP, foi desenvolvido um modelo matemático (ETpN) que definiu 3 regiões para Portugal; surgimento de sintomas no ano de infestação (murchidão); sintomas no ano seguinte à infestação (latência); ausência de sintomas visuais (sem murchidão).

Um ensaio de campo foi realizado em três pinhais representativos das regiões climáticas definidas pelo modelo (ETpN), entre os meses de junho e novembro, com a inoculação de cinco pinheiros saudáveis com 10.000 NMP, no tronco abaixo da copa, com o recurso ao equipamento Arbojet Quick-Jet.

Os pinheiros inoculados foram abatidos duas semanas após detecção visual dos sintomas de murchidão e a madeira amostrada para deteção da presença do NMP. No final do ensaio todos os pinheiros inoculados remanescentes foram também abatidos e amostrados. Foram efetivamente observados casos de latência na região respetiva, mas na região onde era previsto não ocorrer qualquer sintoma, as condições climáticas prevalecentes não eram compatíveis pelo que os pinheiros desenvolveram sintomas de murchidão no ano da inoculação.

Uma vez que a dispersão natural da doença da murchidão dos pinheiros está dependente do voo dos insetos-vetores, para definição de estratégias para a proteção dos pinhais, foi estudado o período, a capacidade e a velocidade de voo de M. saltuarius e M. alternatus (insetos-vetores da Coreia), com recurso a moinhos-de-voo. Para M. saltuarius a distância média de voo por sessão foi de 0.43km para as fêmeas e de 0.50km para os machos. A distância percorrida durante toda a sua vida foi de 1.93km (máximo de 5.21km) para as fêmeas e de 2.71km (máximo de 5.73km) para os machos. No que respeita a M. alternatos a distância média percorrida por sessão foi de 1.53km para as fêmeas e 2.05km para os machos e no total da vida foi de 6.64km (máximo de 15.35km) para as fêmeas e 9.89km (máximo de 29.01km) para os machos.

Tendo em atenção esta grande capacidade de voo dos insetos-vetores do NMP, a dispersão natural da doença foi avaliada ao longo de um transepto com 100m de largura e 6km de extensão delimitado numa mancha contínua de pinheiro-bravo (P. pinaster), na região centro de Portugal, com o seu início na localização de um pinheiro infestados pelo NMP em 2018, numa freguesia até então isenta da doença da murchidão dos pinheiros. Durante os anos de 2019 e 2020, entre os meses de Maio e Outubro, foram colocadas ao longo do transepto 30 armadilhas multifunil com o atrativo Galloprotect 2D-plus, colocadas aos pares (distando 50m entre elas). Todos os M. galloprovincialis capturados foram contabilizados e avaliou-se em laboratório se transportavam NMP. Nos Invernos de 2019/20 e 2020/21 o transepto foi percorrido e todos os pinheiros que exibiam sintomas de declínio foram abatidos e analisados para a presença do NMP. Na prospeção de 2019/20 foram detetados 65 pinheiros em declínio dos quais apenas dois estavam contaminados pelo NMP estando ambos localizados a menos de 100m do foco inicial.

No entanto, no inverno de 2020/21 já foram encontrados 104 pinheiros em declínio ou mortos, dos quais dez estavam infestados pelo NMP. Estes pinheiros mortos foram encontrados distribuídos ao longo de todo o transepto e alguns dos pinheiros infestados encontravam-se na zona final. Paralelamente, dos 510 M. galloprovincialis capturados nas armadilhas durante 2020, 35 transportavam NMP, tendo quarto sido capturados nas armadilhas colocadas mais longe do ponto inicial do transepto.

Assim, no espaço de um ano (entre 2020 e 2021) os insetos-vetores dispersaram rapidamente a doença da murchidão ao longo dos 6km do transepto, tendo alguns transportado o NMP (6.4%).

Outro estudo apresentado, realizado em França, focou-se  na quantificação da dispersão do inseto-vetor (M. galloprovincialis)  através da conetividade genética das populações numa paisagem homogénea de pinheiro-bravo e noutra heterogénea composta por povoamentos de pinheiro e de folhosas. O estudo envolveu a captura de insetos em armadilhas iscadas com atrativos, tendo a maior parte das deslocações ocorrido entre setores geográficos, sugerindo longas deslocações.   

3. Interações entre árvores hospedeiras – NMP – outros microorganismos

O NMP utiliza o estilete para perfurar as paredes celulares e libertar enzimas hidrolíticas para atuar contra os glicanos constituintes das paredes. Espécies de pinheiros consideradas muito (P. pinaster) e pouco suscetíveis à doença da murchidão foram inoculadas com NMP e avaliou-se a progressão da doença, em condições controladas de temperatura do ar e humidade do solo.

As paredes celulares das plantas inoculadas foram caracterizadas com recurso a técnicas de espectroscopia vibracional tendo os dados preliminares revelado diferenças significativas entre a composição das paredes celulares de pinheiros-bravos inoculados e testemunha (não-inoculados), sendo que os compostos fenólicos são aparentemente utilizados como resposta defensiva dos pinheiros à inoculação.

A interação interespecífica entre o NMP e outros microrganismos simbiontes parece ter um papel na promoção da invasão e da sua patogenicidade. Sinais moleculares e químicos influenciam positivamente a sobrevivência, reprodução e dispersão do NMP. Por outro lado, a caracterização da dinâmica das interações entre o NMP e os fungos (utilizando diferentes abordagens com especial enfase à análise meta-genómica) poderá permitir compreender o seu papel no desenvolvimento da doença e poderá fornecer pistas para quebrar o ciclo infecioso. Com efeito, a diversidade e estrutura da comunidade fúngica no pinheiro-bravo varia consoante o avanço da doença da murchidão, sugerindo que a presença do NMP afeta a comunidade de fungos endófitos. Diferenças nas comunidades fúngicas da árvore hospedeira e do NMP foram detetadas tendo os Ophiostomatales sido apenas encontrados em P. pinaster infestados.

4. Meios de controlo e estratégias de gestão da Doença da Murchidão dos Pinheiros

A estratégia do corte-raso, geralmente implementada após a deteção de novos focos da doença da murchidão dos pinheiros em zonas anteriormente isentas, foi comparada com a estratégia de corte seletivos das árvores mortas ou com sintomas. Esta última estratégia, combinada com uma prospeção intensiva, revelou ser mais benéfica para o controlo da doença em termos de custo-eficácia.

No Japão, o controlo da doença tem sido baseado na destruição dos pinheiros infestados, conjugada com a pulverização preventiva com inseticida e injeção no tronco dos pinheiros saudáveis com nematodicida, abordagens com elevados custos e confrontadas com as crescentes restrições ao uso de pesticidas. Assim, atualmente os esforços concentram-se em novas plantações com clones mais resistentes à doença.

Diferentes proveniências de P. pinaster (portuguesas, espanholas, francesas e marroquinas) foram testadas quanto à suscetibilidade ao NMP, em dois viveiros, sendo um pertencente ao programa oficial da Galiza (Espanha) e outro localizado nas Landes (França). Foram obtidas diferenças significativas entre proveniências e viveiros quanto à sobrevivência, desenvolvimento de sintomas visuais, alterações morfológicas dos pinheiros e as densidades das populações de NMP. Foi possível definir um padrão geográfico sendo as proveniências originárias do Sudoeste da Península Ibérica mais resistentes à doença da murchidão.

 A eficácia de diferentes formulações de Benzoato de emamectina contra o NMP foi avaliada em 16 locais da Coreia do Sul. As concentrações mais elevadas, (0.258 μg/ml) foram mais eficazes na supressão da reprodução do NMP, apedar de se terem verificado variações significativas na toxicidade sub-letal, que poderão estar relacionadas com os ingredientes inertes utilizados nas diferentes formulações pelos diferentes produtores.

Apesar de muito eficaz, o controlo químico geralmente utiliza compostos químicos sintéticos muito agressivos e com efeitos adversos para os ecossistemas florestais e até para a saúde humana. Um esforço muito significativo tem sido feito para encontrar produtos mais sustentáveis para luta química contra o NMP baseados em extratos voláteis de produtos naturais, provenientes de plantas ou fungos. Os óleos essenciais são misturas complexas de voláteis, principalmente extraídos por hidrodestilação de plantas aromáticas apresentam  propriedades medicinais que podem revelar-se tóxicos para o NMP, sendo contudo seguros para a árvore-hospedeira e reduzido impacto no ambiente. De entre os testados, o ácido undecanóico revelou forte atividade contra o NMP atingindo eficácia sub-letal (EC50) com a concentração 0.06 μg/ml, enquanto o ácido decanóico necessitou de uma maior concentração (0.13 μg/ml) para o mesmo efeito. Os próximos passos na investigação permitirão determinar o potencial de ácidos saturados de cadeia média. 

Outra linha de investigação para o desenvolvimento de biopesticidas a serem integrados em estratégias sustentáveis para a gestão da doença da murchidão dos pinheiros. Estes estudos estão a ser desenvolvidos em Portugal onde a procura de antagonistas revelou que os fungos nematófagos, Esteya vermicola e E. floridanum, produziram resultados preliminares muito promissores. Estes resultados estão em linha com os efeitos protetivos resultantes da inoculação de E. vermicola coreana (G810) em pinheiros de grandes dimensões efetuada nos Montes Wora (Coreia do Sul) e na província de Kwangdong (China), com taxas de sobrevivência a rondar os 50% e 60%, respetivamente.

Estudos in-vitro realizados em Espanha com outras oito espécies de fungos com potencial nematófago revelaram que várias espécies de Beauveria (B. bassiana e B. pseudobassiana) e Trichoderma citrinoviridae não só suprimiram a reprodução de B. xylophilus como revelaram efeitos letais.

Luís Bonifácio & Edmundo Sousa

Instituto Nacional de Investigação Agrária e Veterinária, I.P. (INIAV), Av. da República, Quinta do Marquês, 2780-157 Oeiras, Portugal. Luis.bonifacio@iniav.pt; GREEN-IT Bioresources for Sustainability, ITQB NOVA, Av. da República, 2780-157 Oeiras, Portugal

Luís Bonifácio é o coordenador do Grupo de Trabalho da IUFRO (international Union of Forest Research Organizations) dedicado à doença da murchidão dos pinheiros (Pine Wilt Disease – 7.02.10).

https://www.iufro.org/science/divisions/division-7/70000/70200/70210/

Post navigation

Previous PostPrevious
Next PostNext
Créditos de las fotos: K. Nakamura-Matori

La División 7 de la Conferencia IUFRO (Sanidad Forestal. Patología y Entomología) tuvo lugar en Lisboa del 6 al 9 de septiembre de 2022, con 350 participantes presentes (y 60 a distancia) de 41 países.

La sesión sobre la Enfermedad del Marchitamiento del Pino (PWD) organizada dentro de esta reunión tuvo una participación masiva en 3 sub-sesiones que implicaron 14 presentaciones orales y 15 pósters.

Se abordaron cuatro temas principales:

1. Historia y encuesta sobre PWD

Han pasado más de 100 años desde que la enfermedad del marchitamiento del pino (PWD), causada por el nematodo de la madera del pino (NMP – Bursaphelenchus xylophilus) invadió Japón, primero en la región suroccidental, y más tarde se extendió por todo el país alcanzando las regiones de clima más frío de alta latitud y gran altitud. Los pinos autóctonos (Pinus thunbergii y P. densiflora) están casi exterminados en algunas de las antiguas zonas dañadas. En algunos lugares donde los pinares son económicamente importantes para la industria maderera o la producción de setas, la regeneración es difícil. Además, los pinos son un componente esencial de los bosques rompevientos y rompearenas de las zonas costeras o de los paisajes tradicionales de Japón.

En Corea, han pasado más de treinta años desde que la enfermedad se detectó por primera vez en un pequeño monte de Busan en 1988, pero ahora, en 2022, se ha notificado en 135 distritos, condados y ciudades. El número de pinos infectados (principalmente P. thunbergii y P. densiflora) ha fluctuado durante 30 años, superando los 2 millones de árboles en 2014. Recientemente había disminuido a 390.000 en 2021, pero en la última temporada de control, el número de pinos infectados aumentó de nuevo, un 22,6% en comparación con el año anterior. A lo largo de los años, las técnicas de investigación y estudio del DMP se han desarrollado considerablemente. Se utilizan etiquetas electrónicas NFC para evitar los puntos ciegos en el seguimiento, y se ha establecido un sistema de gestión de registros mediante código QR desde el seguimiento y diagnóstico de los pinos muertos hasta el control, lo que permite comprobar en tiempo real la información introducida y registrar el proceso de gestión. La secuenciación del genoma completo a escala poblacional de los nematodos coreanos del pinar mostró una estructura poblacional extremadamente estratificada, compuesta principalmente por dos linajes principales dentro de los cuales la diversidad genética es extremadamente limitada. Estos dos linajes están diferencialmente relacionados con cepas de fuera de Corea, lo que sugiere la existencia de varias introducciones independientes.

En 1999, el NMP se detectó en Portugal en pinos marítimos (Pinus pinaster) y en los 20 años siguientes, miles de pinos marítimos murieron cada año, a pesar de los esfuerzos para contener su propagación llevados a cabo por la Autoridad Forestal Portuguesa (ICNF), y siguiendo las directrices de la Decisión de Ejecución 2012/535/UE de la Comisión. En los últimos 11 años, se han analizado más de 83.500 muestras de compuestos de madera de árboles sintomáticos, con una media del 8% de resultados positivos de NMP, y ninguna de la zona tampón (20 km a lo largo de la frontera española). Como resultado de las acciones de contención, se talaron cerca de 18 millones de árboles en declive en el territorio peninsular, especialmente en la Zona Tampón (2,9 millones), y se capturaron alrededor de 43 000 insectos vectores en las trampas. En 2009 se detectó un nuevo foco en la isla de Madeira y en España el DTP se detectó por primera vez en octubre de 2008 y se declaró erradicado en 2013, aunque posteriormente se notificaron otros cinco focos en Cáceres, As Neves, Valverde del Fresno, Sancti-Spiritus y Lagunilla (el más alejado de la frontera portuguesa, a unos 70 km).

En Norteamérica, donde el NMP es autóctono, se descubrió por primera vez en madera de pino de hoja larga (Pinus palustris), en Luisiana, causando daños menores a coníferas autóctonas. En los últimos diez años, debido a una normativa más estricta sobre el NMP, se ha presentado un gran número de muestras de madera de pino a la División Agronómica del Departamento de Agricultura y Servicios al Consumidor de Carolina del Norte. En el año fiscal 2012 a 2022, se analizaron 67 135 muestras de madera de pino y se generaron 7 462 informes en relación con la expedición de certificados fitosanitarios por parte del USDA/APHIS/PPQ para la exportación de troncos de madera de pino. En general, la prevalencia del NMP en las muestras presentadas fue del 2,15%, lo que revela una baja presencia del NMP en los troncos de madera de pino exportados, pero también la importancia de las medidas reglamentarias y las pruebas de laboratorio.

Para la extracción del NMP de muestras de madera, se recomienda generalmente el método de Baermann (embudo o modificado) 24°С o 48°С horas (Schroder et al., 2009; NIMF 27, 2016). El objetivo de nuestra investigación fue determinar el tiempo de exposición y la temperatura óptimos para la extracción de B. xylophilus el método del embudo de Bаermann. Todas las diferencias entre los regímenes de temperatura (18ºC y 25ºC) fueron significativas, con mejores resultados con la temperatura más alta y la mayoría de los nematodos, alrededor del 80%, se extrajeron durante el primer día, que fue significativamente mayor que durante el segundo día.

2. Dinámica y difusión de las PWD

Recientemente se ha informado de la mortalidad de árboles de los bosques autóctonos de EE.UU. asociada al NMP en la cordillera frontal de Colorado. Se estableció una matriz de muestreo para estudiar el NMP en pinos autóctonos (Pinus ponderosa) y escarabajos de cuernos largos (Monochamus clamator y M. scutellatus) durante varios años y en paisajes forestales naturales y urbanos. La fenología de vuelo fue similar para los vectores. El NMP se encontró en el 3,6 y el 4,2% de los pinos y escarabajos muestreados, respectivamente. Se trata del primer informe de asociación entre M. clamator y el NMP en Estados Unidos.

Hasta hace muy poco se suponía que, en las condiciones climáticas portuguesas, los árboles mostrarían síntomas el mismo año de la inoculación de los nematodos por el vector. Sin embargo, sigue habiendo cierta incertidumbre relacionada con la probabilidad de la expresión retardada del marchitamiento del pino. Para evaluar la expresión retardada del marchitamiento del pino (latencia) se creó una base de datos climáticos detallada y el modelo ETpN determinó 3 subregiones en Portugal: “No se espera marchitamiento”, “Latencia (se espera marchitamiento en el año siguiente a la infestación)” o “Expresión del marchitamiento en el año de la inoculación”. Cada mes, de junio a noviembre, se inocularon 5 árboles sanos en cada localización seleccionada, con 10.000 Bx, utilizando el kit Arbojet Quick-Jet, en la parte inferior de la copa. Dos semanas después de los primeros síntomas visuales de marchitamiento, se talaron los árboles y se tomaron muestras para detectar la presencia del NMP. Al final del periodo experimental, todos los árboles restantes también fueron talados y se tomaron muestras para detectar la presencia del NMP. De hecho, se observó latencia en la región esperada. En la región “No se esperaba marchitamiento”, las condiciones climáticas no eran compatibles y el marchitamiento se produjo en el año de la infestación.

Dado que la capacidad de vuelo de los insectos vectores es importante para proteger los pinares, comprobamos la distancia de vuelo, el tiempo y la velocidad de los adultos de M. saltuarius y M. alternatus, dos especies vectoras en Corea, utilizando molinos de vuelo. En M. saltuarius, la distancia media de vuelo de las hembras en una sola sesión de vuelo fue de 0,43 km, mientras que los machos volaron unos 0,50 km. Las distancias medias de vuelo acumuladas durante toda la vida en hembras y machos fueron de 1,93 km (distancia máxima de vuelo: 5,21 km) y 2,71 km (distancia máxima de vuelo: 5,73 km), respectivamente. En M. alternatus, la distancia media de vuelo de las hembras en una sola sesión de vuelo fue de 1,53 km, mientras que los machos volaron unos 2,05 km. Las distancias medias de vuelo acumuladas durante toda la vida en hembras y machos fueron de 6,64 km (distancia máxima de vuelo: 15,35 km) y 9,89 km (distancia máxima de vuelo: 29,01 km), respectivamente.

Teniendo en cuenta la gran capacidad de vuelo del insecto vector, se evaluó en Portugal la propagación del NMP en condiciones naturales a lo largo de un transecto de 6 km de largo y 100 m de ancho establecido en un rodal continuo de P. pinaster, comenzando en la ubicación de un árbol infectado por el NMP detectado en 2018, en una parroquia previamente no afectada. En 2019 y 2020, de mayo a octubre, se colocaron 30 trampas multitúnel con atrayentes Galloprotect 2D-plus en parejas con 50 m de distancia entre ellas, a lo largo del transecto. Se cuantificaron todos los insectos vectores (M. galloprovincialis) capturados y se evaluó la presencia del NMP. En invierno de 2020 y 2021, el transecto se inspeccionó de forma intensiva y se talaron y muestrearon todos los árboles sintomáticos. En el muestreo de 2020 se tomaron muestras de 65 árboles y solo dos estaban infectados por el NMP, situados en los alrededores del foco de infección inicial (a menos de 100 m). Sin embargo, en el muestreo de 2021, el número de pinos muertos o sintomáticos aumentó a 104, de los cuales diez estaban infectados por el NMP y se encontraban cerca del final del transecto. Además, el NMP se encontró en 35 de los 510 insectos-vectores capturados en las trampas durante el verano de 2020, con cuatro escarabajos infectados en las trampas más alejadas de la infección inicial. En el plazo de un año, los insectos vectores se dispersaron rápidamente a lo largo de los 6 km del transecto, algunos de ellos portando el NMP (6,4%) y, en consecuencia, dispersando la enfermedad por toda la zona.

Otro estudio relacionado con la dispersión del insecto vector M. galloprovincialis se llevó a cabo en Francia analizando la conectividad genética de la población para cuantificar la dispersión contemporánea en la parentela, a través de un paisaje homogéneo de pinos marítimos y un paisaje heterogéneo de masas (mixtas) de frondosas y pinos, utilizando escarabajos recogidos en trampas cebadas. Casi todos los desplazamientos se produjeron entre sectores geográficos, lo que sugiere una dispersión a larga distancia.

3. Interacciones entre el hospedador, el NMP y otros microorganismos

El NMP utiliza su estilete para perforar las paredes celulares y liberar enzimas hidrolíticas contra los glicanos de la pared celular. Especies muy susceptibles (P. pinaster) y plantas menos susceptibles (P. pinea) fueron inoculadas con NMP y se monitorizó la progresión de la enfermedad bajo temperaturas y contenidos de agua del suelo controlados. Al final de los ensayos, se encontraron diferencias en el factor de reproducción del nematodo en ambas especies. Se aplicaron técnicas de espectroscopia vibracional de alto rendimiento para una caracterización global de las paredes celulares. Los datos preliminares revelaron que existen propiedades de composición de las paredes celulares significativamente diferentes entre las muestras de P. pinaster inoculadas con NMP y las muestras de P. pinaster de control, donde los compuestos fenólicos están regulados al alza en las plantas inoculadas con NMP, presumiblemente como respuesta a los mecanismos de defensa de las plantas.

La comunicación interespecífica entre el nematodo y sus socios simbióticos, tiene un papel potencial en la promoción de la patogenicidad y la invasividad del NMP. Las señales químicas y moleculares influyen positivamente en la supervivencia, reproducción y propagación del NMP. Por otro lado, la caracterización de la estructura y la dinámica de las interacciones nematodo-hongo utilizando enfoques cultivables y no cultivables, con especial énfasis en los análisis metagenómicos, con el objetivo de comprender si la micobiota asociada al NMP desempeña un papel clave en el desarrollo de la enfermedad, y a qué extensión se puede dirigir para interrumpir el ciclo de la enfermedad. La diversidad y estructura de las comunidades fúngicas en P. pinaster varió según el estado de la enfermedad, lo que sugiere que la presencia del NMP afecta a las comunidades fúngicas endofíticas. Tanto para las comunidades fúngicas de P. pinaster como para las de NMP, también se observaron diferencias en términos entre localizaciones y sólo se detectaron Ophiostomatales en P. pinaster infectado por NMP, corroborando nuestros resultados de culturomics obtenidos previamente.

4. Métodos de control y estrategias de gestión

Se comparó la estrategia de tala rasa aplicada habitualmente tras la primera detección en zonas libres del NMP con una alternativa de tala selectiva árbol por árbol combinada con una mayor vigilancia, y esta última resultó ser la mejor opción para controlar el NMP en términos de rentabilidad.

En Japón, la lucha contra el DMP consiste principalmente en la eliminación de los árboles dañados, la pulverización preventiva de insecticida en los árboles vivos y la inyección de nematicida en los troncos, con enormes costes y limitaciones para el uso de plaguicidas. En las nuevas plantaciones de pinos se suelen utilizar plántulas de clones resistentes.

Se ensayó la susceptibilidad en procedencias de P. pinaster (española, portuguesa, francesa y marroquí) frente a B. xylophilus y se comparó su comportamiento con el de dos huertos semilleros, uno perteneciente al programa de mejora de P. pinaster gallego en España y el otro a las Landas, en Francia. Se encontraron diferencias significativas en supervivencia, síntomas de marchitez, rasgos morfológicos y densidad de poblaciones de nematodos entre las procedencias y los huertos semilleros. Se encontró un patrón geográfico en el que las procedencias del sureste de la Península Ibérica mostraban la mayor resistencia a PWD.

Se compara en Corea la eficacia de dieciséis formulaciones de benzoato de emamectina (EB) producidas localmente contra el NMP. A concentraciones elevadas de 0,258 μg/ml, la reproducción de los nematodos se vio altamente suprimida en todas las formulaciones excepto en tres. La reproducción de las poblaciones expuestas a las formulaciones de los dos grupos varió significativamente con independencia de las toxicidades subletales. Estas variaciones pueden atribuirse a las diferencias en los ingredientes inertes utilizados por los productores.

Aunque es muy eficaz, el control químico suele recurrir al uso de productos químicos sintéticos altamente nocivos con efectos adversos sobre los biosistemas forestales y la salud humana. En un esfuerzo por desarrollar una gestión química más sostenible del NMP, se han investigado activamente los volátiles y extractos volátiles de fuentes naturales, principalmente plantas y hongos. Los aceites esenciales son mezclas complejas de volátiles vegetales, extraídos principalmente por hidrodestilación de especies de plantas medicinales y aromáticas, y pueden resultar tóxicos para el NMP y seguros para el huésped pino, con un bajo impacto ambiental. El ácido undecanoico mostró una actividad más fuerte, alcanzando una concentración media efectiva máxima (EC50) de 0,06 μg/mL, mientras que el ácido decanoico mostró una EC50 más alta, concretamente de 0,13 μg/mL Futuras investigaciones determinarán la actividad de otros ácidos grasos de cadena media como potenciales moléculas biopesticidas para su uso en estrategias sostenibles de gestión de plagas.

La búsqueda de antagonistas también está aumentando, y en ensayos de laboratorio realizados en Portugal, los hongos nematófagos Esteya vermicola y E. floridanum revelaron ser un prometedor agente de biocontrol contra el NMP. De hecho, se evaluaron los efectos protectores de inoculaciones de E. vermicola coreana (G810) en los grandes pinos del monte Wora, en Corea del Sur, y en la provincia de Kwangdong, en China, revelando tasas de supervivencia del 50% y el 60%, respectivamente.

En España se ensayaron in vitro otras ocho especies fúngicas con potencial nematófago, en las que las especies de Beauveria (B. bassiana y B. pseudobassiana) y Trichoderma citrinoviridae no sólo impidieron la reproducción del NMP, sino que también mostraron efecto nematicida.

Luís Bonifácio & Edmundo Sousa

Instituto Nacional de Investigação Agrária e Veterinária, I.P. (INIAV), Av. da República, Quinta do Marquês, 2780-157 Oeiras, Portugal. Luis.bonifacio@iniav.pt; GREEN-IT Bioresources for Sustainability, ITQB NOVA, Av. da República, 2780-157 Oeiras, Portugal

Luís Bonifácio es el coordinador del grupo de trabajo de la IUFRO (Unión Internacional de Organizaciones de Investigación Forestal) sobre la enfermedad del marchitamiento del pino (7.02.10).

https://www.iufro.org/science/divisions/division-7/70000/70200/70210/

Post navigation

Previous PostPrevious
Next PostNext

Archieves

  • March 2026
  • January 2026
  • November 2025
  • June 2025
  • May 2025
  • Categories

  • {:fr}Bioeconomie{:}{:es}Bioeconomia{:}{:pt}Bioeconomia{:}{:gb}Bioeconomy{:}
  • {:fr}Climate change{:}
  • {:fr}Membres associés{:}{:es}Socios asociados{:}{:pt}Associados{:}{:gb}Associate members{:}
  • {:fr}Membres{:}{:es}Miembros{:}{:pt}Membros{:}{:gb}Members{:}
  • {:fr}Archives{:}
  • Recent Posts

    • Webinar – Let’s Talk About Planted Forests – 8 April 2026
    • International Day of Forests 2026 – Message from Christophe Orazio, Director of the IEFC
    • Webinar – Let’s Talk About Planted Forests – 27 February 2026
    • Introduction of the pine wood nematode in France: what can research do?
    • Introdução do nemátodo do pinheiro em França: o que pode a investigação fazer?

    Search

    ©IEFC Copyright ©2025 Tous droits réservés